- 移动端

上海艾跃(Active Motif)生物科技有限公司品牌商
10 年
手机商铺
- NaN
- 0.2999999999999998
- 0.2999999999999998
- 2.3
- 2.3
上海艾跃(Active Motif)生物科技有限公司
入驻年限:10 年
- 联系人:
Active Motif
- 所在地区:
上海 闵行区
- 业务范围:
试剂、实验室仪器 / 设备、技术服务、抗体
- 经营模式:
生产厂商 经销商
推荐产品
公司新闻/正文
组蛋白变体家族(二):H3 变体概览
15 人阅读发布时间:2026-10-23 16:41
导语
在真核细胞核中,DNA 与组蛋白组装形成染色质。这种高度组织化的核蛋白结构通过影响 DNA、组蛋白以及染色质紧缩状态的变化,成为表观遗传信息的来源,这些变化共同调节基因组功能,决定基因表达程序。染色质是一种高度有序的结构,主要由 DNA、组蛋白和其他染色体相关蛋白组成。其基本单位是核小体,每个核小体由两个拷贝的核心组蛋白 H2A、H2B、H3 和 H4 构成。核小体之间的连接 DNA 被连接组蛋白 H1 结合,H1 可以稳定高阶染色质结构。
组蛋白除了存在如甲基化、乙酰化和磷酸化等多种翻译后修饰(PTM)之外,还存在组蛋白变体(histone variants)来调节染色质开放程度和基因组功能。组蛋白变体可以通过改变组蛋白-组蛋白或组蛋白-DNA 之间的相互作用,调控核小体的稳定性和可及性,从而重塑染色质结构。同时,它们还可携带特异性的翻译后修饰(PTMs),并参与形成具有特定功能的染色质复合体,进而精细调控基因表达。
之前的文章中我们已经介绍了 H2A 组蛋白变体家族及其功能,本文将浅述 H3 组蛋白变体及其功能,帮助读者更加充分的理解组蛋白变体对于染色质调控机制以及疾病发生发展的重要意义。
一 H3 组蛋白变体家族
H3 是目前研究最深入、功能最丰富的组蛋白家族之一,与其他组蛋白家族相比,H3 变体不仅数量多,而且在序列、沉积方式及生物学功能上具有更高的多样性。人类 H3 家族包括复制依赖型 H3.1 和 H3.2,以及复制非依赖型或组织特异性变体 H3.3、H3.T(H3.4)、H3.5、H3.Y、H3.X 和着丝粒特异性变体 CENP-A。尽管多数 H3 变体与 H3.1 相比仅存在极少数氨基酸差异,但这些差异能够影响其与组蛋白伴侣蛋白的结合、核小体装配及翻译后修饰(PTMs)模式,进而决定其在染色质组织、基因表达调控和细胞命运决定中的不同功能。例如,H3.1 和 H3.2 仅相差一个氨基酸,却具有不同的沉积机制和修饰偏好:H3.1 富集 H3K14ac 等活化标记,而 H3.2 则富集 H3K27me2/3 等抑制性标记,提示即使极其细微的序列差异也能够产生显著的功能分化。
-
H3.3
H3.3 是目前研究最为深入的 H3 组蛋白变体之一,也是复制非依赖性组蛋白沉积(replication-independent deposition)的典型代表。与复制依赖型 H3.1 相比,H3.3 仅存在 5 个氨基酸差异(A31S、S87A、V89I、M90G 和 C96S),但这些序列差异足以赋予 H3.3 独特的核小体性质、组蛋白伴侣识别能力及翻译后修饰(post-translational modifications, PTMs)特征。H3.3 形成的核小体具有相对较高的动态性,其 H2A-H2B 二聚体交换速率更高,有利于维持染色质的动态开放状态,因此 H3.3 通常富集于活跃转录基因及其他功能活跃的染色质区域。
H3.3 的 87–90 位氨基酸区域构成其区别于经典 H3 的关键组蛋白伴侣识别序列,使其能够被 HIRA(histone cell cycle regulator)等伴侣蛋白识别,并以复制非依赖性的方式沉积于活跃基因区域。相比之下,H3.1 和 H3.2 主要通过 CAF-1(chromatin assembly factor 1)复合物介导,在 DNA 复制过程中完成复制依赖性的组蛋白沉积。除沉积机制外,H3.3 还具有独特的翻译后修饰谱。例如,H3.3 特异性的 Ser31 磷酸化可参与调控 KDM4B 活性,从而影响 H3K9 和 H3K36 的去甲基化状态,并进一步参与端粒异染色质的形成与染色质可及性调控。因此,H3.3 并非仅是经典 H3 的替代形式,而是通过其独特的序列、沉积途径及修饰特征参与维持特定的染色质状态和基因表达程序。
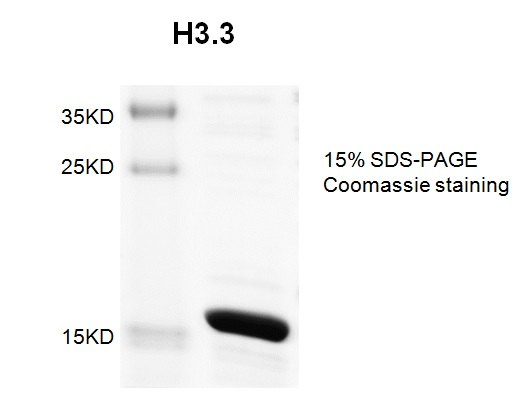
图 1:Recombinant Histone H3.3 (Human)(Cat #31295)SDS 考马斯亮蓝染色。
值得注意的是,H3.3 编码基因 H3F3A 和 H3F3B 的特定氨基酸残基突变与多种人类肿瘤高度相关。这些突变并非随机分布,而是呈现出显著的位点和肿瘤类型特异性,并可通过干扰组蛋白甲基化、染色质调控及转录程序发挥「oncohistone(致癌性组蛋白)」作用。
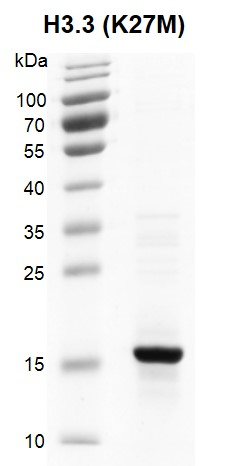
图 2:Recombinant Histone H3.3 (K27M)(Cat #31552)SDS 考马斯亮蓝染色。
H3.3K27M 是最具代表性的 H3.3 致癌性突变之一,即第 27 位赖氨酸(K)被甲硫氨酸(M)取代,主要见于弥漫性中线胶质瘤(diffuse midline glioma, DMG),尤其是儿童弥漫性内生性脑桥胶质瘤(diffuse intrinsic pontine glioma, DIPG),此外也常见于丘脑和脊髓等中线部位的胶质瘤。H3.3K27M 被认为是该类肿瘤的重要分子驱动事件,其核心作用机制与 PRC2/EZH2 介导的 H3K27 甲基化异常密切相关,可导致全局及局部 H3K27me3 水平改变,从而重塑染色质状态和基因表达程序。
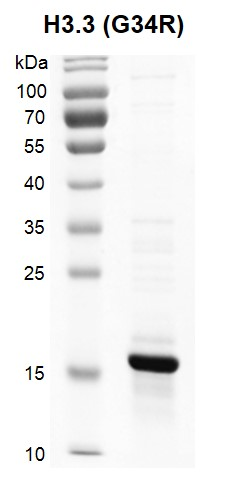
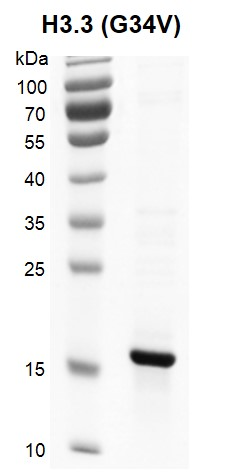
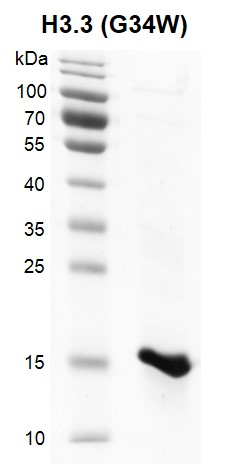
图 3:Recombinant Histone H3.3 (G34R)(Cat #31549)和 Recombinant Histone H3.3 (G34V)(Cat #31550)和 Recombinant Histone H3.3 (G34W) (Cat #31551)SDS 考马斯亮蓝染色。
H3.3G34R/V 是另一类具有高度肿瘤特异性的突变,即第 34 位甘氨酸(G)分别被精氨酸(R)或缬氨酸(V)取代,主要发生于青少年及年轻成人的大脑半球高级别胶质瘤(high-grade glioma, HGG)。该类肿瘤常伴随 TP53 和 ATRX 等基因异常。G34 位点位于 H3.3 N 端尾部,靠近 H3K36,因此 G34R/V 突变可通过影响邻近位点的修饰及相关染色质调控因子,进而扰乱 H3K36 相关的表观遗传调控网络。
H3.3G34W 则表现出更加显著的肿瘤类型特异性,即第 34 位甘氨酸被色氨酸(W)取代。该突变与骨巨细胞瘤(giant cell tumor of bone, GCTB)高度相关,被认为是该肿瘤极具代表性的分子标志之一,在绝大多数 GCTB 中均可检测到 H3.3G34W 突变。与胶质瘤中的 G34R/V 不同,G34W 主要与骨肿瘤发生相关,体现了 H3.3 不同氨基酸替换所产生的显著疾病特异性。
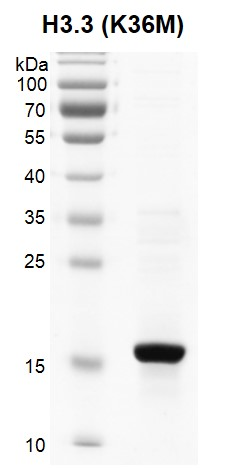
图 4:Recombinant Histone H3.3 (K36M)(Cat #31553)SDS 考马斯亮蓝染色。
H3.3K36M 是另一重要的致癌性突变,即第 36 位赖氨酸被甲硫氨酸取代,主要见于软骨母细胞瘤(chondroblastoma),同时也可在部分儿童软组织肿瘤及其他恶性肿瘤中检测到。由于 K36 是 H3K36 甲基化的关键位点,K36M 突变可显著干扰 H3K36 甲基转移酶的正常活性,导致 H3K36me2/me3 等修饰发生广泛改变,从而影响染色质结构及基因转录。
总体而言,H3.3 突变具有明显的「位点—修饰—染色质—肿瘤类型」对应关系:K27M 主要通过扰乱 H3K27 甲基化及 PRC2 功能影响染色质调控;G34R/V 则主要干扰 H3K36 邻近区域的表观遗传调控;G34W 表现出高度特异性的骨巨细胞瘤关联;而 K36M 则直接重塑 H3K36 甲基化网络。这些发现表明,H3.3 不仅是染色质结构的重要组成成分,其特定位点的突变还能够通过显性干扰(dominant-negative)或异常获得性功能(gain-of-function)等机制,将局部的组蛋白序列改变放大为广泛的表观遗传和转录异常,最终促进肿瘤发生发展。
-
CENP-A
CENP-A(Centromere Protein A,又称 CenH3)是真核细胞中唯.一定位于着丝粒的 H3 变体,是决定着丝粒身份和组装动粒的核心表观遗传标记。 CENP-A 仅与经典 H3 共享约 50%的氨基酸序列同源性,其独特的组蛋白折叠结构域(HFD)及 N、C 末端序列赋予了其特异性的结构和功能。与经典 H3 核小体相比,CENP-A 核小体仅缠绕约 121 bp DNA,并具有更松散的构象和更高的 DNA 末端动态性,有利于着丝粒蛋白复合物的募集。其 C 末端尾部可与 CCAN(constitutive centromere-associated network)核心组分 CENP-C 结合,而 HFD 内特有的两个氨基酸插入(Arg80 和 Gly81)则介导其与 CENP-N 相互作用,共同促进着丝粒和动粒复合体的组装。此外,CENP-A 由特异性伴侣 HJURP(Holliday junction recognition protein)介导沉积于着丝粒区域,并与多种 CCAN 蛋白协同维持着丝粒功能。相比经典 H3,目前已报道的 CENP-A 翻译后修饰种类相对较少,主要包括 Ser7、Ser16 和 Ser18 磷酸化。其中,Ser7 磷酸化具有细胞周期依赖性,可通过招募 14-3-3 蛋白促进 CENP-C 结合和动粒组装,而 Ser16 和 Ser18 磷酸化则对有丝分裂过程中染色体准确分离至关重要。因此,CENP-A 通过其独特的结构特征、特异性伴侣介导的沉积机制以及受限的翻译后修饰,共同维持着丝粒功能、染色体正确分离及基因组稳定性。
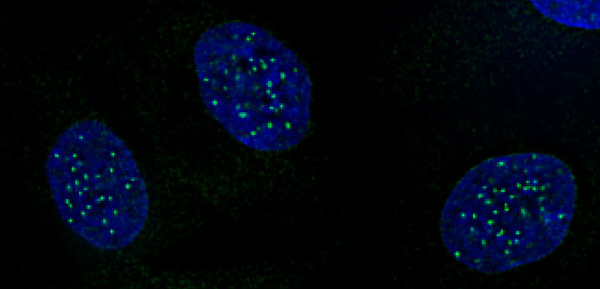
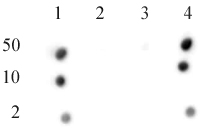
图 5:CENP-A phospho Ser18 antibody (pAb)(Cat # 61483)IF 染色(上)和 DB 检测(下,Lane 1: CENP-A phospho Ser 16 and phospho Ser18,Lane 2: CENP-A unmodified,Lane 3: CENP-A phospho Ser 16,Lane 4: CENP-A phospho Ser 18)。
-
H3.T
H3.T(又称 H3.4)是一种主要在睾丸中表达的组织特异性 H3 变体。 与 H3.1 相比,H3.T 仅存在 4 个氨基酸差异(A24V、V71M、A98S 和 A111V),但这些变化赋予其独特的核小体装配特性。H3.T 能够与 H4 形成四聚体,并进一步与 H2A–H2B 二聚体组装成稳定核小体。然而,其沉积过程依赖特异性的组蛋白伴侣:经典伴侣 Nap1 难以高效完成 H3.T 核小体组装,而人源 Nap2 促进 H3.T 核小体组装,并提高核小体对 MNase 消化的耐受性,提示其能够形成更加稳定的核小体-DNA 结构。进一步研究表明,H3.T 的 Val111 残基是 Nap2 介导其优先装配的关键决定因素。
-
H3.5
H3.5 是一种灵长类动物特有的 H3 变体,其与 H3.1 相比存在 9 个氨基酸差异。 尽管 H3.5 能够与其他核心组蛋白组装形成核小体,但其稳定性明显低于 H3.1 和 H3.3。结构分析表明,H3.5 中 Leu103 取代了 H3.1 的 Phe104,削弱了与 H4 之间的疏水相互作用,是导致核小体稳定性下降的关键结构基础。与 H3.3 相比,H3.5 在活细胞中表现出更快的核小体交换速率,提示其具有更高的染色质动态性。此外,H3.5 主要富集于基因转录起始位点(TSS)附近,推测其可能通过调控启动子区域染色质可及性参与基因转录调控。
-
H3.Y
与 H3.5 类似,H3.Y 主要在人类及部分灵长类动物中表达,目前认为其参与应激反应及转录活化相关过程,但具体机制仍在研究中。H3.Y 与 H3.1 相比具有 30 个氨基酸差异。这些序列改变重塑了其与 DNA 的相互作用,例如多个参与 DNA 结合的关键残基发生替换,降低了 H3.Y 核小体对 DNA 的约束能力。结构生物学和 MNase 消化实验表明,H3.Y 核小体具有更高的 DNA 末端柔性和可及性,同时与连接组蛋白 H1 的结合能力减弱,使染色质呈现更加开放的高级结构。此外,H3.Y 主要富集于基因转录起始位点(TSS)附近,可能通过促进启动子区域染色质开放和增强 DNA 可及性参与基因转录调控。
-
H3.X
H3.X 是一种与 H3.Y 高度同源的 H3 变体,与 H3.5 和 H3.X 一样,H3.X 同样具有高度的灵长类动物特异性。但其与经典 H3.1/H3.2 相比存在多个关键氨基酸替换,并具有独特的延长 C 末端尾部。这些序列特征显著改变了其潜在的翻译后修饰模式。例如,经典 H3 在有丝分裂和细胞应激过程中可发生 Ser10 和 Ser28 磷酸化,而 H3.X 相应位点分别被 Ala10 和 Arg28 取代,不具备对应经典 H3 位点发生相同翻译后修饰的能力;此外,H3.X 中的 Gln14 和 Ser79 分别取代了 H3 中的 Lys14 和 Lys79,从而丧失了 H3K14 乙酰化和 H3K79 甲基化等经典活性染色质修饰位点。这些结构差异提示 H3.X 可能具有区别于其他 H3 变体的染色质调控机制,但其具体生物学功能仍有待进一步研究。
二 总结
总体而言,H3 变体具有显著的组织和时空表达特异性,其精确的沉积与动态调控对于细胞分化、组织发育及基因组稳态的维持至关重要。不同 H3 变体通过特异性的表达模式、伴侣蛋白识别及翻译后修饰,共同构建了高度动态的染色质调控网络。例如,H3.T 和 H3.5 主要表达于睾丸,参与精子发生及减数分裂过程,其异常表达与无精子症等生殖障碍密切相关;H3.3 则广泛参与肌肉分化、胚胎原肠胚形成及神经系统发育,并通过调控关键发育基因的染色质状态维持正常的发育程序。
近年来,大量研究进一步证实,H3 变体的异常表达或体细胞突变与多种疾病密切相关,尤其是 H3.3 突变(如 K27M 和 G34R/V)已被认为是弥漫性中线胶质瘤、儿童高级别胶质瘤及软骨母细胞瘤等肿瘤的重要分子驱动事件。这些突变能够重塑染色质结构和表观遗传修饰,扰乱基因表达程序,促进肿瘤发生、发展及治疗耐受。此外,H3.3 还参与衰老和细胞衰老等生物学过程,提示其在维持染色质稳态和基因组完整性中具有持续而重要的作用。因此,深入解析不同 H3 变体的结构特征、沉积机制及功能调控网络,不仅有助于揭示染色质动态调控的基本规律,也将为发育异常、生殖障碍及肿瘤等相关疾病的机制研究和精准治疗提供新的理论基础和潜在靶点。
正如组蛋白密码理论奠基人 David Allis 所言,「组蛋白上的每一个氨基酸都至关重要」。大量研究表明,即使极其细微的氨基酸差异,也足以改变组蛋白变体的翻译后修饰模式、核小体稳定性以及其与 DNA、连接组蛋白、组蛋白伴侣、染色质重塑复合物和表观遗传调控因子的相互作用,从而深刻影响染色质构象及基因表达程序。尽管近年来组蛋白变体的研究取得了显著进展,其在不同生理和病理过程中的功能逐渐被揭示,但不同组蛋白变体、经典组蛋白及翻译后修饰之间复杂的协同调控机制仍有待进一步阐明。未来,深入解析三者之间的动态互作及其对特异性基因表达程序的调控,将有助于全面理解染色质动态调控的分子基础,并为表观遗传相关疾病的精准诊断与靶向治疗提供新的理论依据和干预策略。
随着组蛋白变体研究不断深入,针对不同变体及其翻译后修饰的高质量研究工具已成为解析染色质调控机制的重要基础。Active Motif 拥有各种组蛋白变体相关的重组蛋白和抗体。另外,我们还拥有组蛋白乙酰化酶(HATs)、组蛋白去乙酰化酶(HDACs)、Bromo 结构域、甲基转移酶(DNMT)、组蛋白甲基转移酶(HMT)和组蛋白脱甲基化酶(HDM)、染色质重塑蛋白(如组蛋白)等一系列表观遗传领域蛋白。由于表观遗传失调与许多疾病有关,因此这些调节剂是研究人员进行检测开发和药物发现计划的重要工具。
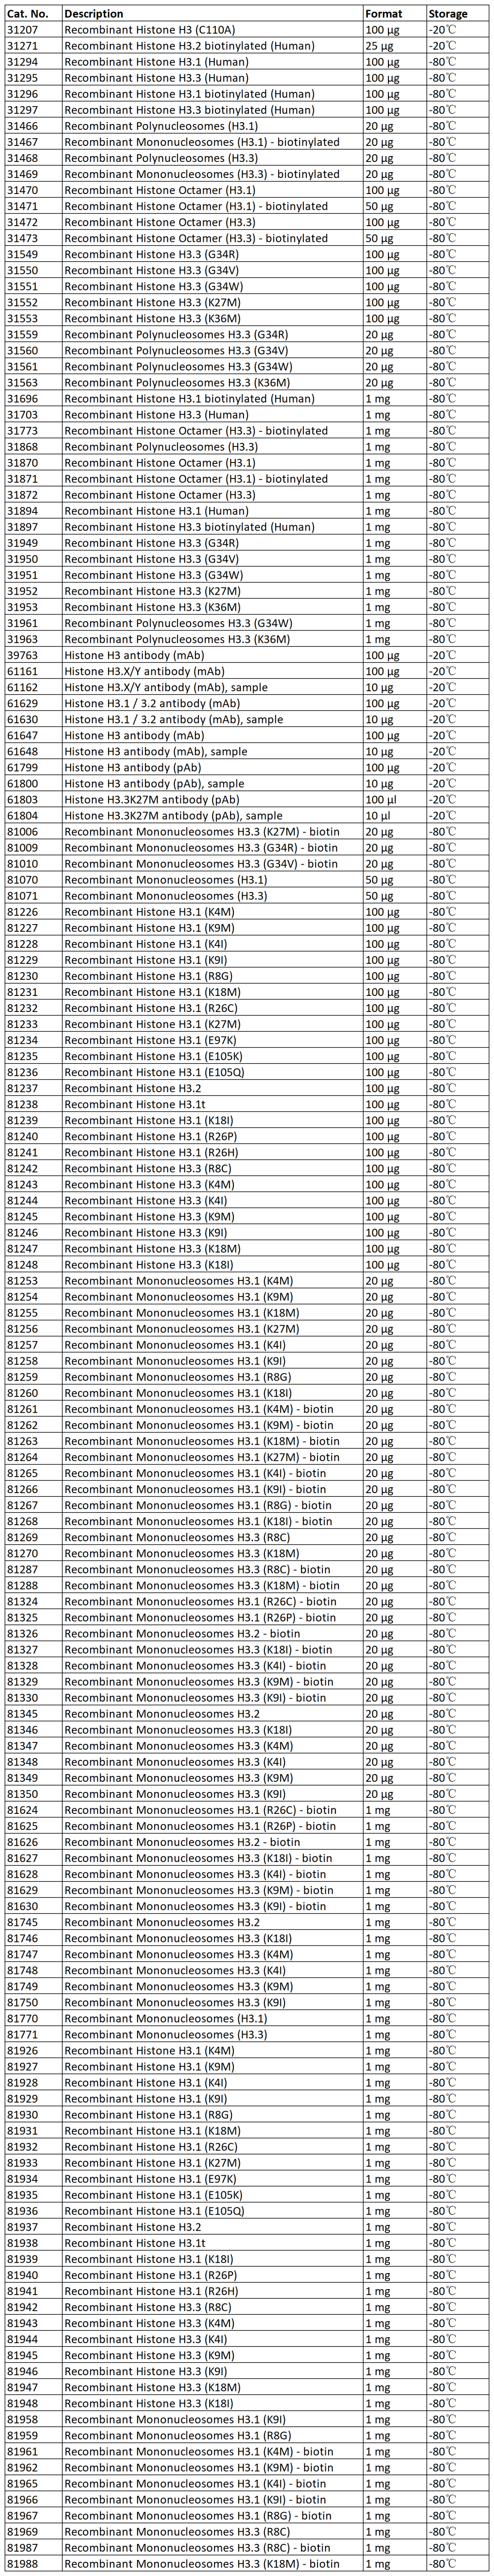
向上滑动查阅 H3 变体相关抗体和蛋白
关注 Active Motif
Active Motif 拥有 20 多年的经验,为生命科学、临床、制药和药物研发组织提供表观遗传学和基因调控研究工具。我们拥有世界领.先的实验产品组合、全基因组服务以及验证过的用于表观遗传和基因调控研究的抗体,我们的产品和服务已被 1000 多篇发表文章和出版物引用。
在 Active Motif,我们相信表观基因组的知识将是精准医学发展的关键。因此,我们在全球范围内提供端对端的技术服务支持。包括 ChIP-seq,ATAC-seq 等众多技术服务。